Farmacologie
Seria: Insulina, metabolism și modulatori hormonali - Episodul 10: Interacțiunea dintre androgeni, insulină, GH și IGF-1
8 septembrie 2026
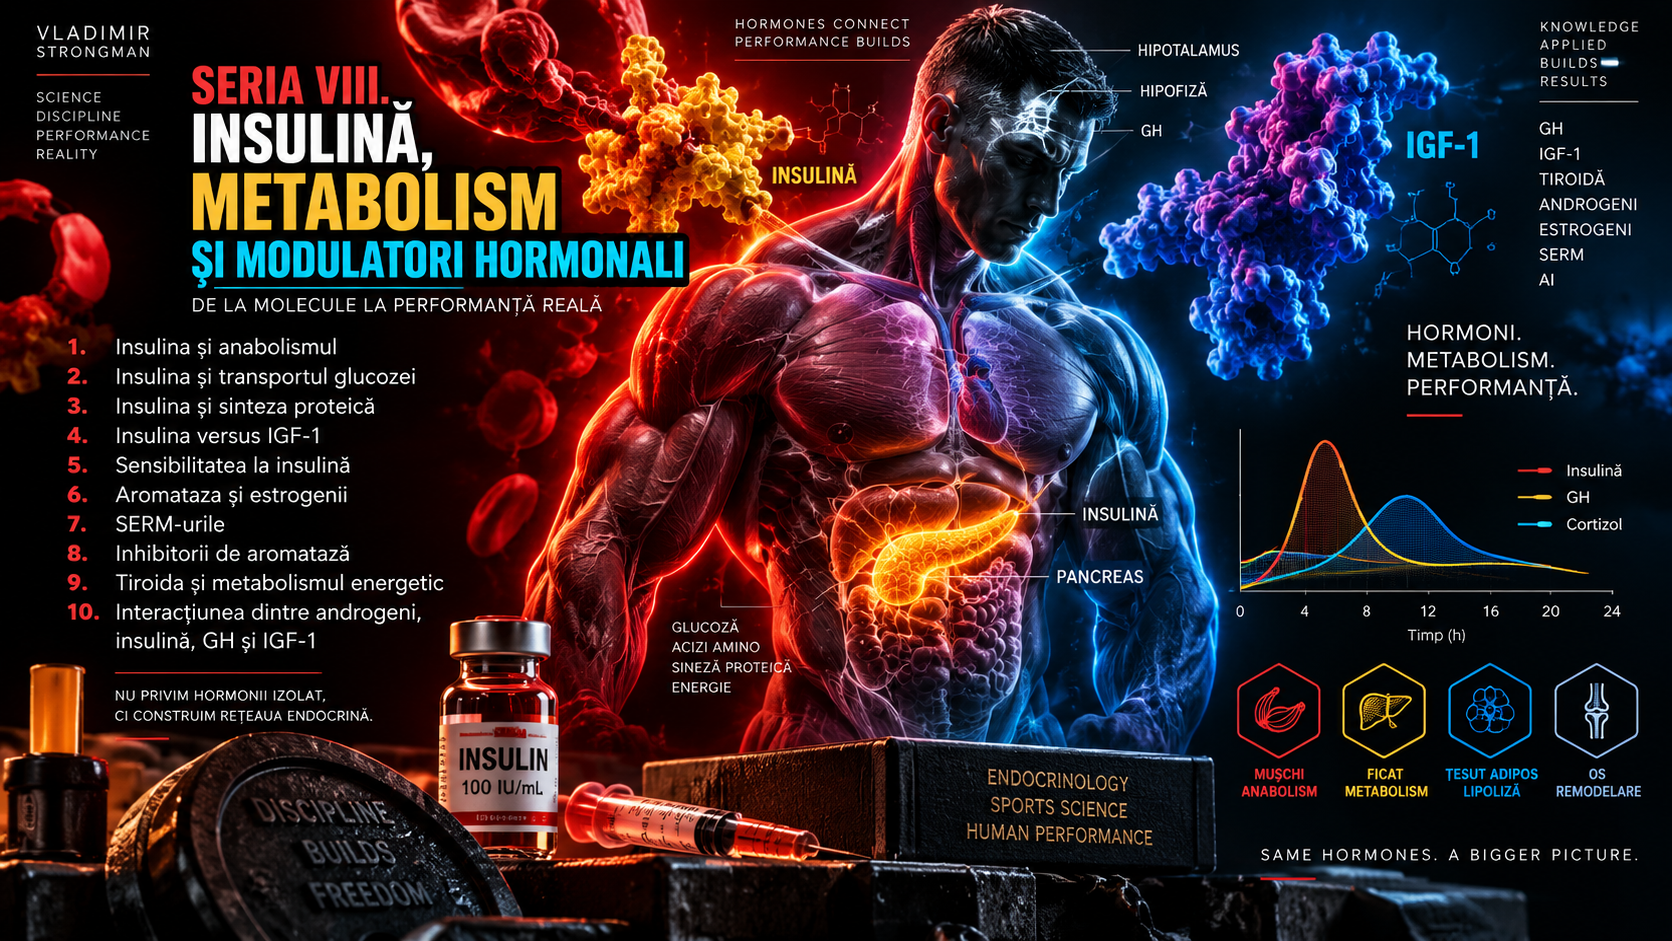
Episodul 10 închide seria „Insulina, metabolism și modulatori hormonali” printr-o schimbare de perspectivă. Până acum am analizat separat insulina, transportul glucozei, sinteza proteică, IGF-1, sensibilitatea la insulină, estrogenii, SERM-urile, inhibitorii de aromatază și tiroida. În organism însă, aceste sisteme nu funcționează în capitole separate. Ele se suprapun, se condiționează reciproc și își schimbă efectele în funcție de nutriție, somn, efort, compoziție corporală și context endocrin.
Androgenii, insulina, hormonul de creștere GH și IGF-1 sunt patru dintre cele mai importante semnale implicate în masa musculară, utilizarea nutrienților și adaptarea la antrenament. A le numi însă pur și simplu „hormoni anabolici” ascunde diferențele esențiale dintre ei. Unul reglează expresia genică prin receptorul androgenic, altul gestionează fluxul glucozei și al nutrienților, GH mobilizează combustibil și stimulează producerea IGF-1, iar IGF-1 transmite semnale de creștere și supraviețuire celulară.
Pentru sportivul de forță, întrebarea utilă nu este „care hormon este cel mai anabolic?”, ci „ce se întâmplă când aceste semnale apar împreună într-un organism real?”. Răspunsul include mușchi, ficat, țesut adipos, pancreas, sistem cardiovascular, os și sistem nervos. Tocmai această rețea explică de ce mai mult semnal anabolic nu înseamnă automat metabolism mai sănătos, recuperare mai bună sau performanță mai mare.
1. De ce trebuie priviți ca o rețea, nu ca patru hormoni separați
În fiziologie, aceeași celulă primește simultan zeci de semnale. O fibră musculară poate fi expusă în același timp la insulină, androgeni, IGF-1, catecolamine, hormoni tiroidieni, cortizol și semnale mecanice produse de contracție. Răspunsul final este rezultatul integrării lor, nu efectul izolat al unei singure molecule.
De aceea, o intervenție care amplifică o singură cale poate schimba întregul sistem. GH poate crește lipoliza, dar poate reduce sensibilitatea la insulină. IGF-1 poate avea efecte insulin-like, dar circulă în mare parte legat de IGFBP. Androgenii pot crește masa slabă, iar această schimbare de compoziție poate modifica secundar sensibilitatea la insulină. Biologia este o rețea de consecințe.
2. Patru semnale, patru roluri de bază
Androgenii modifică transcripția genică și influențează masa musculară, osul, eritropoieza și funcția sexuală. Insulina este principalul hormon al stării postprandiale și coordonează captarea glucozei, sinteza glicogenului, lipogeneza și inhibarea lipolizei. GH are un profil mai complex, stimulând creșterea, sinteza IGF-1 și mobilizarea acizilor grași.
IGF-1 leagă semnalizarea de creștere de disponibilitatea energetică și de acțiunea GH. Are efecte asupra proliferării, diferențierii, supraviețuirii celulare și metabolismului. Deși receptorul IGF-1 și receptorul insulinic sunt rude structurale, hormonii nu sunt interschimbabili. Fiecare semnal poartă o informație biologică distinctă despre starea organismului.
3. Receptorul androgenic: semnalul care schimbă programul celular
Testosteronul și alți androgeni se leagă de receptorul androgenic, un receptor nuclear care funcționează ca factor de transcripție. Complexul hormon-receptor ajunge în nucleu, se leagă de elemente de răspuns androgenic și modifică expresia unor gene implicate în diferențierea musculară, metabolism și remodelarea țesuturilor.
Acesta este un mecanism diferit de semnalizarea rapidă a insulinei sau IGF-1. Receptorul androgenic nu „deschide” direct GLUT4 și nu pornește instantaneu sinteza proteică. El modifică mediul celular în care celelalte căi funcționează, influențând capacitatea mușchiului de a răspunde la antrenament, aminoacizi și semnale de creștere.
4. Receptorul insulinic și calea PI3K-Akt
Receptorul insulinic este un receptor tirozin-kinazic. După legarea insulinei, sunt activate proteine IRS, PI3K și Akt. În mușchi, această cascadă favorizează translocarea GLUT4 către membrană, sinteza glicogenului și o parte dintre semnalele care susțin metabolismul proteic. În ficat, insulina reduce producția de glucoză și favorizează stocarea energiei.
Aceeași cale Akt se intersectează cu semnalizarea mTOR, cu reglarea FoxO și cu procesele de degradare proteică. De aceea, insulina are un rol important în balanța proteică musculară, mai ales prin limitarea proteolizei atunci când aminoacizii sunt disponibili. Dar insulina nu poate construi țesut muscular din nimic: substratul și stimulul mecanic rămân indispensabile.
5. Receptorul GH: JAK2, STAT5 și semnalul hepatic
GH se leagă de receptorul GHR, care activează în principal JAK2 și factorii STAT, mai ales STAT5. În ficat, această cale stimulează transcripția IGF-1 și a unor proteine de legare. Semnalizarea GH nu se reduce însă la ficat: receptorii săi există în multiple țesuturi, iar efectele metabolice directe includ mobilizarea grăsimilor și modificarea răspunsului la insulină.
Această dualitate este esențială. GH poate susține un mediu favorabil creșterii și sintezei proteice, dar în același timp poate produce o stare anti-insulinică la nivelul metabolismului glucozei. Organismul folosește acest efect pentru a conserva glucoza în perioade de post și pentru a mobiliza acizii grași ca sursă de energie.
6. Receptorul IGF-1: ruda apropiată a receptorului insulinic
Receptorul IGF-1, IGF1R, este tot un receptor tirozin-kinazic și seamănă structural cu receptorul insulinic. Activează căi precum PI3K-Akt-mTOR și Ras-MAPK. Prima este importantă pentru supraviețuire, metabolism și sinteză proteică, iar a doua este strâns legată de proliferare și diferențiere celulară.
Similaritatea receptorilor explică de ce există suprapuneri biologice între insulină și IGF-1. Totuși, afinitatea, distribuția receptorilor, concentrațiile hormonale și proteinele de legare fac ca semnalele fiziologice să rămână distincte. IGF-1 nu este „insulină anabolică”, iar insulina nu este o versiune metabolică simplificată a IGF-1.
7. Receptori hibrizi insulină/IGF-1
Celulele pot exprima receptori hibrizi formați din jumătăți de receptor insulinic și IGF1R. Existența lor arată că separarea dintre cele două sisteme nu este absolută. Afinitatea acestor hibrizi favorizează adesea IGF-1, iar rolul lor exact variază în funcție de țesut și context.
Pentru înțelegerea hipertrofiei, mesajul important este că aceeași celulă poate integra semnale de disponibilitate energetică și semnale de creștere prin infrastructură moleculară parțial comună. Aceasta nu înseamnă că stimularea maximă a tuturor receptorilor este optimă. Sistemele biologice au limite, feedback și costuri.
8. Ficatul este un nod central al rețelei
Ficatul decide în fiecare moment dacă glucoza este stocată sau eliberată, transformă substraturi energetice și produce o mare parte din IGF-1 circulant. Insulina și GH ajung aici cu mesaje parțial opuse: insulina semnalează disponibilitate energetică, iar GH poate favoriza mobilizarea combustibilului și producerea IGF-1.
Într-un organism bine hrănit, aceste semnale pot coopera pentru creștere. În post sau malnutriție, situația se schimbă: GH poate fi crescut, dar producția hepatică de IGF-1 poate scădea prin rezistență hepatică la GH și prin lipsa semnalului insulinic adecvat. Creșterea nu este doar o problemă de GH, ci de context energetic.
9. Insulina este permisivă pentru producția hepatică de IGF-1
Datele fiziologice arată că insulina contribuie la menținerea expresiei receptorului GH și la funcționarea axei hepatice GH-IGF-1. În deficitul sever de insulină, cum se întâmplă în diabetul tip 1 necontrolat, GH poate fi ridicat, dar IGF-1 este adesea scăzut. Axa devine parțial decuplată.
Acest exemplu demonstrează de ce „mai mult GH” nu garantează „mai mult IGF-1”. Ficatul trebuie să primească și informația că energia este disponibilă. Insulina participă la această permisiune metabolică. Axa de creștere citește astfel nu doar semnalul hipofizar, ci și starea nutrițională.
10. Postul: când GH și insulina merg în direcții opuse
În post, insulina scade, iar secreția GH poate crește în anumite momente. Efectul metabolic direct al GH devine mai vizibil: crește lipoliza și contribuie la conservarea glucozei pentru țesuturile dependente de ea. Acizii grași devin o sursă energetică mai importantă.
În acest context, producția IGF-1 nu crește proporțional cu GH, deoarece organismul nu interpretează postul ca pe un moment potrivit pentru creștere tisulară maximă. Această separare dintre efectele directe ale GH și efectele mediate prin IGF-1 este unul dintre cele mai elegante exemple de economie energetică endocrină.
11. Starea postprandială: insulina schimbă prioritățile
După masă, creșterea insulinei reduce lipoliza și favorizează captarea glucozei și sinteza glicogenului. Aminoacizii intră în circulație, iar semnalizarea mTOR răspunde la disponibilitatea lor. Într-un asemenea mediu, semnalul GH-IGF-1 poate susține mai eficient procesele de creștere și refacere.
Aceasta explică de ce anabolismul nu este produs de un singur hormon. Organismul are nevoie simultan de energie, aminoacizi, semnal mecanic și un mediu endocrin permisiv. Insulina spune în esență că nutrienții sunt disponibili; GH și IGF-1 contribuie la programul de creștere; androgenii modifică capacitatea țesuturilor de a răspunde.
12. Androgenii și mușchiul: mai mult decât sinteză proteică
Androgenii favorizează creșterea masei musculare prin modificarea expresiei genice, stimularea diferențierii miogenice și influențarea celulelor satelit. Ei pot modifica și balanța dintre factori pro-anabolici și inhibitori ai creșterii, inclusiv sistemul miostatinei. Efectul final se construiește în timp, nu într-un singur vârf hormonal.
Mușchiul crescut devine la rândul său un organ metabolic mai mare. Mai mult țesut muscular înseamnă, în principiu, o capacitate mai mare de stocare a glicogenului și de eliminare a glucozei din sânge. De aceea, unele efecte metabolice ale androgenilor sunt indirecte și depind de schimbarea compoziției corporale.
13. Insulina: mai ales anti-catabolică atunci când aminoacizii sunt suficienți
În mușchiul uman, aminoacizii și exercițiul de rezistență sunt stimulii centrali pentru sinteza proteinelor musculare. Insulina, în interval fiziologic, are un efect foarte important asupra degradării proteice și asupra transportului nutrienților. Când aminoacizii sunt disponibili, reducerea proteolizei contribuie la o balanță proteică netă mai favorabilă.
Aceasta corectează mitul potrivit căruia insulina ar fi un comutator direct care transformă orice nutrient în mușchi. Fără tensiune mecanică, aminoacizi și recuperare, un semnal insulinic mare nu creează automat hipertrofie utilă. Excesul energetic poate fi direcționat și către țesutul adipos.
14. IGF-1 și mTORC1
IGF-1 activează PI3K-Akt și poate contribui la activarea mTORC1, una dintre principalele platforme de integrare a semnalelor de creștere. Dar mTORC1 citește și aminoacizii, energia celulară și tensiunea mecanică. Un singur hormon nu controlează întregul nod de semnalizare.
În contextul antrenamentului de forță, mTORC1 răspunde puternic la încărcarea mecanică și la aportul de aminoacizi esențiali. IGF-1 poate amplifica mediul de creștere, dar ideea că hipertrofia este o simplă consecință a unei valori serice mari de IGF-1 este prea simplă. Semnalizarea locală și încărcarea contează enorm.
15. GH și metabolismul proteinelor
GH poate crește retenția de azot și sinteza proteică în anumite contexte și are efecte atât directe, cât și mediate prin IGF-1. În același timp, creșterea masei slabe observată sub influența GH poate include apă extracelulară și țesut conjunctiv, nu doar proteină contractilă.
Această diferență este importantă pentru sport. Kilogramele de masă slabă măsurate printr-o metodă de compoziție corporală nu sunt sinonime cu fibre musculare contractile noi. Efectele GH asupra colagenului, apei, organelor și metabolismului trebuie separate de efectul asupra forței musculare propriu-zise.
16. Aminoacizii și leucina: materia primă nu poate fi înlocuită de hormoni
Leucina și ceilalți aminoacizi esențiali furnizează atât substratul pentru proteinele noi, cât și semnale care activează mTORC1. Nici androgenii, nici insulina, nici GH și nici IGF-1 nu pot sintetiza proteine musculare în absența aminoacizilor necesari. Endocrinologia gestionează procesul, dar nu inventează materia primă.
Aceasta este o lecție utilă pentru cultura sportivă, unde hormonii sunt uneori tratați ca înlocuitori ai nutriției. În realitate, răspunsul anabolic este mai apropiat de o construcție: antrenamentul oferă proiectul mecanic, aminoacizii oferă cărămizile, energia permite lucrul, iar hormonii modifică ritmul și eficiența șantierului.
17. Tensiunea mecanică este semnalul pe care hormonii nu îl pot copia
Fibrele musculare detectează deformarea și tensiunea prin mecanisme de mecanotransducție. Aceste semnale pot activa mTOR și alte căi independent de creșteri majore ale hormonilor sistemici. De aceea, hipertrofia produsă de antrenament nu este o simplă reflexie a testosteronului, GH sau IGF-1 din sânge.
Un mediu hormonal favorabil poate amplifica adaptarea, dar nu substituie specificitatea încărcării. În Strongman, yoke-ul, farmers walk, log press-ul și deadlift-ul produc semnale mecanice diferite. Adaptarea musculară și neurală păstrează amprenta probei, chiar dacă mediul endocrin este același.
18. Celulele satelit și remodelarea musculară
Celulele satelit contribuie la repararea și remodelarea fibrelor, iar activarea lor poate fi influențată de androgeni, IGF-1 și factori locali de creștere. În hipertrofia importantă, adăugarea de noi nuclei în fibra musculară poate sprijini capacitatea de sinteză proteică pe termen lung.
Acest proces nu este un mecanism magic separat de antrenament. Leziunea, tensiunea, inflamația controlată și semnalele locale creează contextul în care celulele satelit participă la adaptare. Hormonii schimbă probabilitatea și amplitudinea răspunsului, nu elimină nevoia de stimul mecanic.
19. Miostatina și frânele interne ale creșterii
Creșterea musculară este controlată nu doar de semnale stimulatoare, ci și de frâne moleculare. Miostatina limitează hipertrofia, iar androgenii pot modifica expresia unor componente ale acestei rețele. IGF-1 și Akt pot de asemenea contrabalansa căi catabolice sau inhibitorii creșterii.
Fiziologia folosește aceste frâne pentru a preveni creșterea necontrolată și pentru a păstra proporția între mușchi, tendoane, os și capacitatea metabolică. Când masa musculară sau forța cresc foarte repede, țesuturile de suport pot rămâne în urmă. Performanța depinde și de sincronizarea adaptărilor.
20. Glicogenul: locul în care insulina întâlnește performanța
Insulina favorizează captarea glucozei și activarea sintezei glicogenului în mușchi. Pentru probe repetate, medley-uri, seturi multiple și antrenamente cu volum mare, rezervele de glicogen pot deveni decisive. Androgenii, GH și IGF-1 nu înlocuiesc această nevoie energetică.
Un atlet foarte puternic poate avea totuși performanță slabă la repetări dacă disponibilitatea carbohidraților și refacerea glicogenului sunt insuficiente. Aici se vede diferența dintre capacitatea structurală de a produce forță și capacitatea metabolică de a repeta efortul. Insulina este una dintre punțile dintre cele două.
21. GLUT4 și contracția musculară
Insulina deplasează GLUT4 către membrana fibrei musculare prin PI3K-Akt, dar contracția poate activa translocarea GLUT4 prin căi parțial independente de insulină, inclusiv AMPK și semnale legate de calciu. Acesta este unul dintre motivele pentru care exercițiul poate îmbunătăți captarea glucozei chiar când sensibilitatea la insulină nu este ideală.
Pentru sportivul masiv, această cale este o resursă metabolică majoră. Mușchiul activ devine un consumator eficient de glucoză. Totuși, avantajul nu anulează efectele negative ale grăsimii viscerale, somnului insuficient sau excesului energetic cronic asupra sensibilității insulinice.
22. Androgenii și sensibilitatea la insulină: relația depinde de context
La bărbații cu hipogonadism și obezitate, normalizarea testosteronului poate îmbunătăți compoziția corporală și uneori sensibilitatea la insulină, prin creșterea masei slabe, reducerea grăsimii și modificarea inflamației. Aceste date nu înseamnă că orice creștere a androgenilor peste fiziologie produce beneficii metabolice proporționale.
Răspunsul este în formă de context, nu de slogan. Deficitul androgenic poate fi metabolic nefavorabil, dar excesul farmacologic poate aduce alte costuri: modificări lipidice, tensiune, hematocrit, somn și funcție vasculară. O axă nu poate fi evaluată numai prin masa musculară obținută.
23. Compoziția corporală mediază o parte din efectele androgenilor
Mușchiul și țesutul adipos au efecte metabolice opuse în multe situații. Mai mult mușchi înseamnă mai mult spațiu pentru glicogen și captarea glucozei, în timp ce mai multă grăsime viscerală înseamnă flux mai mare de acizi grași, adipokine și inflamație. Androgenii pot modifica ambele compartimente.
De aceea, efectul metabolic net al unui androgen nu poate fi dedus doar din receptorul androgenic. El include schimbarea masei musculare, a grăsimii, a activității, a apetitului, a retenției de lichide și a altor hormoni. Organismul integrează rezultatul final, nu intenția farmacologică.
24. Excesul androgenic și rezistența la insulină
În unele contexte clinice de exces androgenic, cum este sindromul ovarului polichistic, hiperandrogenismul și rezistența la insulină se pot întreține reciproc. La bărbați, datele privind androgenii suprfiziologici sunt mai heterogene, iar efectele sunt influențate de compoziția corporală și de celelalte substanțe sau hormoni prezenți.
Concluzia prudentă este că nu există o linie simplă „mai mult androgen = mai bună sensibilitate la insulină”. Fiziologia normală are o zonă funcțională, iar ieșirea mult din această zonă poate produce efecte care nu mai seamănă cu tratamentul unui deficit.
25. GH este, metabolic, un antagonist parțial al insulinei
Unul dintre efectele clasice ale excesului de GH este scăderea sensibilității la insulină. Acromegalia oferă un exemplu clinic clar: pacienții pot dezvolta hiperinsulinemie, intoleranță la glucoză sau diabet. GH stimulează lipoliza și crește fluxul de acizi grași, iar aceasta poate interfera cu utilizarea glucozei.
Această proprietate nu este o „eroare” a hormonului. În post, conservarea glucozei este utilă. Problema apare atunci când semnalul GH este prea puternic sau persistent într-un mediu deja caracterizat de surplus energetic și insulină mare. Atunci o adaptare utilă poate deveni disfuncție metabolică.
26. Lipoliza indusă de GH și acizii grași liberi
GH stimulează mobilizarea acizilor grași din țesutul adipos. Creșterea acizilor grași liberi oferă combustibil, dar poate reduce oxidarea glucozei și poate contribui la rezistență la insulină în mușchi și ficat. Acest efect explică o parte din antagonismul dintre GH și insulină.
Într-un sportiv cu masă corporală foarte mare, fluxul lipidic este influențat și de grăsimea viscerală, alimentație și nivelul de activitate. GH nu acționează pe o tablă curată. Același nivel de semnal poate produce consecințe metabolice diferite într-un atlet relativ slab față de unul cu adipositate viscerală importantă.
27. IGF-1 are efecte insulin-like, dar nu este insulină
IGF-1 poate crește captarea glucozei și poate reduce producția hepatică de glucoză în anumite condiții. În experimente și în tratamentul unor deficite rare, efectele sale pot scădea glicemia. Tocmai de aceea, IGF-1 poate contrabalansa o parte dintre efectele anti-insulinice ale GH.
Dar acțiunea IGF-1 este modulată de IGFBP-uri, receptorii tisulari și concentrațiile fiziologice. Hormonul nu circulă liber în aceeași manieră ca insulina după masă. A trata cele două sisteme ca pe două versiuni ale aceleiași molecule ignoră arhitectura lor endocrină diferită.
28. De ce GH și IGF-1 pot avea efecte metabolice opuse
GH și IGF-1 sunt conectați prin aceeași axă, dar nu au efecte identice. GH tinde să stimuleze lipoliza și să reducă sensibilitatea la insulină, în timp ce IGF-1 poate avea efecte care facilitează utilizarea glucozei. Axa funcționează tocmai prin această combinație de semnale.
Această aparentă contradicție permite organismului să adapteze metabolismul la starea energetică. GH poate mobiliza combustibil, iar IGF-1 poate susține creșterea atunci când nutriția și insulina permit acest lucru. Separarea funcțiilor oferă flexibilitate metabolică, nu incoerență.
29. IGFBP-urile controlează cât IGF-1 este cu adevărat disponibil
Cea mai mare parte a IGF-1 circulant este legată de proteine de transport, în special IGFBP-3 și complexul ternar cu ALS. Aceste proteine îi prelungesc timpul de circulație și îi controlează accesul către țesuturi. O valoare totală de IGF-1 nu spune singură cât semnal biologic ajunge la fiecare receptor.
IGFBP-urile nu sunt simple cutii de transport. Unele pot limita acțiunea IGF-1, altele pot facilita distribuția, iar proteazele pot modifica local disponibilitatea. De aceea, axa GH-IGF-1 are mai multe trepte de reglare decât o simplă relație „GH sus, IGF-1 sus”.
30. Insulina și IGFBP-1: legătura directă dintre hrană și IGF-1
Insulina suprimă producția hepatică de IGFBP-1. După masă, scăderea IGFBP-1 poate crește fracția de IGF disponibilă pentru receptori. În post, când insulina este mică, IGFBP-1 crește. Astfel, disponibilitatea energetică poate schimba rapid bioactivitatea axei IGF.
Aceasta este una dintre cele mai concrete intersecții dintre insulină și IGF-1: insulina nu doar transportă glucoza, ci modifică și mediul în care factorii de creștere circulă. Organismul leagă astfel informația nutrițională de decizia biologică privind creșterea.
31. SHBG: încă o punte între insulină și androgeni
Insulina și starea metabolică influențează producția hepatică de SHBG, proteina care leagă testosteronul și alți hormoni sexuali. Hiperinsulinemia, obezitatea și steatoza hepatică sunt frecvent asociate cu SHBG mai mic. Astfel, metabolismul glucozei poate schimba și modul în care androgenii circulă.
Un SHBG mic nu înseamnă automat androgeni „mai eficienți”. El poate fi un marker al contextului metabolic și hepatic. Interpretarea testosteronului total, liber și a SHBG trebuie făcută împreună, mai ales la persoane cu masă corporală mare, rezistență la insulină sau expuneri hormonale care modifică producția hepatică.
32. Țesutul adipos nu este doar depozit de energie
Adipocitul răspunde la insulină, GH, androgeni și estrogeni și secretă adipokine care influențează apetitul, inflamația și sensibilitatea la insulină. Insulina inhibă lipoliza, GH o stimulează, iar androgenii pot modifica distribuția grăsimii și compoziția corporală. Aceste semnale se întâlnesc permanent în țesutul adipos.
Când adipocitele sunt hipertrofiate și grăsimea viscerală crește, fluxul de acizi grași și mediatorii inflamatori pot afecta ficatul și mușchiul. În acel punct, aceeași insulină trebuie secretată în cantitate mai mare pentru a obține același efect. Rețeaua endocrină începe să funcționeze pe un fundal mai puțin favorabil.
33. Grăsimea viscerală poate domina tabloul metabolic
În Strongman, o masă corporală mare poate include cantități impresionante de mușchi, dar și grăsime viscerală. Aceasta din urmă are o importanță metabolică disproporționată. Este asociată cu rezistență la insulină, inflamație, steatoză hepatică și risc cardiovascular, indiferent cât de mare este masa musculară.
Aici apare o limită a gândirii pur anabolice. Un sportiv poate avea semnale puternice de creștere și în același timp un mediu metabolic nefavorabil. Masa musculară mare nu șterge automat efectele grăsimii viscerale asupra insulinei, ficatului și vaselor.
34. Ficatul gras poate altera mai multe axe în același timp
Steatoza hepatică este legată de rezistență hepatică la insulină, producție anormală de glucoză, trigliceride și modificări ale proteinelor produse de ficat. Pentru că ficatul produce SHBG, IGF-1 și multe proteine de transport, o problemă hepatică poate modifica simultan mai multe analize endocrine.
De aceea, un profil hormonal ciudat nu trebuie interpretat izolat. IGF-1, SHBG, glicemia, trigliceridele și transaminazele pot fi piese ale aceluiași tablou metabolic. Corectarea unei singure cifre hormonale fără a privi ficatul riscă să trateze efectul, nu cauza.
35. Pancreasul și celula beta: cine plătește pentru rezistența la insulină
Când mușchiul și ficatul răspund mai slab la insulină, pancreasul poate compensa prin secreție mai mare. Glicemia poate rămâne normală mult timp, dar cu prețul hiperinsulinemiei. Dacă cererea depășește capacitatea celulelor beta, toleranța la glucoză se deteriorează.
Excesul de GH poate crește această presiune prin efectul anti-insulinic. Grăsimea viscerală și somnul slab o pot amplifica. Mușchiul mare și activitatea fizică pot ajuta, dar nu garantează protecție completă. Pancreasul este unul dintre organele care suportă costul metabolic al întregii rețele.
36. Hiperinsulinemia nu este o strategie anabolică
Insulina este necesară pentru metabolism normal și are roluri anabolice și anti-catabolice, dar hiperinsulinemia cronică este de obicei un semn că organismul trebuie să secrete mai mult pentru a depăși rezistența periferică. A confunda această compensare cu un avantaj de creștere este o eroare de interpretare.
Într-un organism rezistent la insulină, unele căi pot rămâne relativ active, inclusiv lipogeneza hepatică, în timp ce controlul glucozei se deteriorează. Rezultatul nu este „mai mult anabolism util”, ci o repartizare metabolică din ce în ce mai nefavorabilă.
37. Hipoglicemia: riscul extrem al manipulării insulinei
Insulina administrată exogen poate reduce rapid glicemia dacă efectul depășește disponibilitatea glucozei. Hipoglicemia severă poate produce confuzie, convulsii, pierderea conștienței, aritmii și deces. Nu există nimic „anabolic” în privarea creierului de combustibilul său imediat esențial.
De aceea, discuția despre insulină în sport trebuie să rămână una de mecanism și risc, nu de protocol. Fiziologia postprandială și tratamentul diabetului nu pot fi copiate în siguranță ca instrumente de performanță. Marja dintre efect metabolic și urgență poate deveni periculos de mică.
38. Apa extracelulară poate mima creșterea anabolică
Insulina, GH, androgenii și aportul de carbohidrați pot modifica balanța de sodiu, glicogen și apă. Glicogenul stochează apă, iar GH poate crește retenția hidrosalină. Unele modificări rapide ale masei slabe sunt astfel volum lichidian, nu țesut contractil nou.
Pentru evaluarea progresului, cântarul este insuficient. Circumferințele, performanța, compoziția corporală și evoluția în timp oferă mai mult context. O creștere de câteva kilograme în câteva zile nu poate reprezenta câteva kilograme de proteină musculară nou sintetizată.
39. Sodiul, volumul plasmatic și tensiunea
Retenția de sodiu și apă crește volumul extracelular și poate contribui la creșterea tensiunii arteriale. Insulina are efecte renale asupra sodiului, GH poate produce edeme, iar androgenii pot influența tensiunea prin mai multe mecanisme directe și indirecte.
La un sportiv de 120-160 kg, câteva procente în plus de volum și presiune pot conta. Inima și rinichii nu interpretează retenția ca pe o „pompare” utilă. Ei trebuie să gestioneze fizic un volum circulant și o rezistență vasculară mai mari.
40. Sistemul cardiovascular este locul unde costurile se adună
Androgenii pot modifica tensiunea, lipidele și hematocritul. GH și IGF-1 pot influența creșterea cardiacă și structura țesuturilor. Insulina și rezistența la insulină se leagă de disfuncția endotelială și risc cardiometabolic. Fiecare semnal are propria contribuție, iar combinația poate fi mai importantă decât fiecare separat.
Forța maximă cere presiuni arteriale tranzitorii enorme. Un sistem cardiovascular sănătos poate tolera aceste vârfuri mai bine decât unul expus cronic la hipertensiune, apnee, hematocrit mare și disfuncție metabolică. Performanța de moment și sănătatea infrastructurii cardiovasculare sunt două lucruri diferite.
41. Tensiunea arterială nu poate fi dedusă din hormoni
Nicio valoare de testosteron, insulină, GH sau IGF-1 nu poate înlocui măsurarea tensiunii. Dacă riscul este cardiovascular, markerul trebuie măsurat direct. Hormonal, putem înțelege mecanisme posibile; clinic, trebuie să știm ce se întâmplă efectiv în sistemul circulator.
Aceeași regulă se aplică glicemiei, lipidelor și hematocritului. Endocrinologia oferă context, dar nu trebuie folosită pentru a ghici valori care pot fi măsurate simplu. Cu cât sportivul este mai mare și mai expus la sarcini extreme, cu atât această disciplină devine mai importantă.
42. Lipidele: androgenii și rezistența la insulină pot trage în aceeași direcție
Unii androgeni, mai ales în expuneri farmacologice, pot reduce HDL și modifica LDL. Rezistența la insulină și steatoza hepatică pot crește trigliceridele și particulele aterogene. Când aceste efecte coexistă, profilul lipidic poate deveni mult mai nefavorabil decât sugerează simpla creștere a masei musculare.
IGF-1 și GH au relații mai complexe cu metabolismul lipidic, iar efectul depinde de deficit, exces și context clinic. În practică, colesterolul total, LDL, HDL, trigliceridele și, când este cazul, markerii mai avansați trebuie interpretați direct, nu presupus după hormonii folosiți.
43. Eritropoieza și hematocritul: androgenii adaugă o variabilă proprie
Testosteronul stimulează eritropoieza prin mecanisme care includ eritropoietina și reglarea fierului. Creșterea masei eritrocitare poate susține transportul oxigenului, dar hematocritul prea mare crește vâscozitatea sângelui și poate modifica încărcarea cardiovasculară.
GH și IGF-1 nu sunt principalii regulatori ai hematocritului în acest context, dar pot modifica volumul plasmatic și compoziția corporală. Astfel, interpretarea hemogramei trebuie făcută împreună cu hidratarea, tensiunea și simptomele, nu ca o simplă consecință a „anabolismului”.
44. Inima răspunde și ea la semnale de creștere
Receptorii pentru androgeni, insulină, GH și IGF-1 există și în sistemul cardiovascular. În fiziologie, acești hormoni susțin dezvoltarea, metabolismul și funcția cardiacă. În exces, semnalele de creștere și presiunea mecanică pot contribui la remodelare structurală nefavorabilă.
Un ventricul stâng mai gros nu poate fi catalogat automat drept „inimă mai puternică”. Hipertrofia fiziologică și cea patologică diferă prin geometrie, funcție, fibroză și context hemodinamic. La atletul de forță, tensiunea, masa corporală și somnul trebuie puse alături de mediul hormonal.
45. Osul integrează androgeni, IGF-1, insulină și încărcare mecanică
Osul este un țesut metabolic activ. Androgenii și estrogenii influențează remodelarea, IGF-1 participă la formarea osoasă, iar insulina și starea energetică modifică mediul anabolizant. Încărcarea mecanică oferă semnalul local care orientează adaptarea scheletică.
Această cooperare explică de ce un hormon nu poate compensa complet deficiențele celorlalte componente. Osul puternic necesită stimul mecanic, minerale, vitamina D, aport energetic și semnale endocrine potrivite. În Strongman, scheletul este fundația pe care se descarcă forțe extreme.
46. Tendonul și țesutul conjunctiv nu cresc în același ritm cu mușchiul
GH și IGF-1 pot influența sinteza colagenului și remodelarea țesutului conjunctiv, iar androgenii pot accelera creșterea forței și masei musculare. Problema este că tendonul are vascularizație, turnover și ritm de adaptare diferite față de mușchi.
Când capacitatea de a produce forță crește mai repede decât capacitatea structurilor de a o transmite, apare o nepotrivire mecanică. Strongman-ul amplifică această problemă prin prize, unghiuri și încărcări neobișnuite. Un mediu „anabolic” pentru mușchi nu garantează automat tendon indestructibil.
47. Somnul organizează pulsul GH și sensibilitatea la insulină
O parte importantă a secreției GH apare în pulsuri legate de somnul profund. Privarea de somn poate modifica axa GH, sensibilitatea la insulină, apetitul și activitatea simpatică. Astfel, somnul este una dintre variabilele care influențează simultan două dintre sistemele centrale ale acestui episod.
La sportivii foarte masivi, apneea obstructivă de somn poate fragmenta somnul și poate agrava hipertensiunea și rezistența la insulină. Niciun nivel impresionant de forță nu neutralizează hipoxia nocturnă repetată. Recuperarea endocrină începe uneori cu respirația, nu cu un hormon nou.
48. Pulsatilitatea GH contează
GH nu este secretat constant, ci în pulsuri, iar amplitudinea și frecvența acestora depind de somn, vârstă, sex, compoziție corporală, exercițiu și nutriție. Aceeași concentrație medie poate ascunde tipare de secreție foarte diferite.
Acesta este motivul pentru care o singură dozare GH este dificil de interpretat în multe situații. IGF-1 este adesea un indicator mai stabil al activității axei, dar și el depinde de vârstă, ficat, nutriție și starea insulinică. Din nou, contextul bate cifra izolată.
49. Exercițiul acut schimbă toată rețeaua
O sesiune grea poate crește catecolaminele și GH, reduce temporar insulina în timpul efortului, apoi crește sensibilitatea musculară la insulină după antrenament. Fluxul de glucoză, lactat și acizi grași se schimbă de la minut la minut. Hormonii răspund la cerința energetică, nu la o schemă statică.
De aceea, analizele recoltate imediat după efort maximal pot arăta diferit de valorile de repaus. Interpretarea medicală trebuie să țină cont de momentul recoltării, ultima masă, somn și antrenament. Un biomarker fără context temporal poate spune o poveste greșită.
50. Hipertrofia și forța nu sunt același rezultat
Androgenii, insulină, GH și IGF-1 pot influența masa și metabolismul muscular, dar forța depinde și de recrutarea unităților motorii, coordonare, tehnică, pârghii și rigiditatea țesuturilor. Un mușchi mai mare oferă potențial, nu un rezultat garantat pe bară.
În Strongman, specificitatea este și mai evidentă. Masa în plus poate ajuta la deadlift sau yoke, dar poate penaliza mobilitatea, viteza și toleranța la efort. Un sistem anabolic care crește greutatea corporală poate îmbunătăți o probă și înrăutăți alta.
51. Strongman: masa corporală mare schimbă toate ecuațiile
La categoria Open, corpul funcționează adesea la o masă pentru care comparațiile cu populația generală devin imperfecte. Necesarul energetic este enorm, mușchiul poate stoca mult glicogen, dar și volumul de sânge, tensiunea mecanică, apneea și riscul de rezistență la insulină pot crește.
Aici interacțiunea dintre androgeni, insulină, GH și IGF-1 devine practică. Aceeași combinație care susține recuperarea și masa corporală poate pune presiune pe glicemie, tensiune, inimă și somn. A evalua doar performanța în sală înseamnă a vedea o singură față a sistemului.
52. Surplusul caloric amplifică semnalele de creștere, dar are un prag
Pentru hipertrofie, un aport energetic suficient facilitează sinteza proteică și recuperarea. Dar surplusul tot mai mare nu produce creștere musculară liniară. După un punct, o proporție tot mai mare din energie este stocată ca grăsime, iar sensibilitatea la insulină se poate deteriora.
În acel moment, mai multă insulină este necesară pentru aceeași gestionare a glucozei, iar grăsimea viscerală adaugă inflamație și flux lipidic. Un surplus util pentru performanță poate deveni un surplus care sabotează rețeaua metabolică pe care încearcă să o alimenteze.
53. Deficitul energetic schimbă axa GH-IGF-1
În restricție calorică severă, insulina scade, IGF-1 poate scădea, iar GH poate rămâne normal sau crește printr-o formă de rezistență hepatică la GH. Organismul prioritizează mobilizarea combustibilului și conservarea funcțiilor esențiale în locul creșterii maxime.
Acesta este motivul pentru care o valoare mare de GH în post nu trebuie interpretată ca „anabolism crescut”. Semnificația unui hormon depinde de mediul în care apare. În lipsa energiei și a insulinei suficiente, aceeași axă are un rol metabolic diferit.
54. Cortizolul și stresul pot schimba raportul dintre creștere și recuperare
Cortizolul mobilizează energie în stres și poate antagoniza unele efecte insulinice. Un volum de antrenament prea mare, somnul slab, boala și deficitul energetic pot menține un context catabolic chiar dacă androgenii sau IGF-1 par favorabili pe analiză.
Recuperarea nu este un concurs între testosteron și cortizol, dar balanța energetică și stresul influențează răspunsul la toate semnalele discutate. Un organism suprasolicitat poate primi semnale de creștere, dar poate să nu aibă resursele pentru a le transforma eficient în adaptare.
55. Ce analize pot descrie rețeaua
În funcție de întrebarea clinică, pot fi utile testosteronul total și liber, SHBG, IGF-1, glicemia, insulina à jeun, HbA1c, profilul lipidic, funcția hepatică, hemograma și tensiunea arterială. GH bazal este mai greu de interpretat din cauza secreției pulsatile.
Niciun panel nu trebuie transformat într-un ritual universal. Analizele au sens când răspund unei întrebări și sunt interpretate împreună cu simptomele, istoricul, medicația, antrenamentul și compoziția corporală. Mai multe cifre nu înseamnă automat mai multă înțelegere.
56. Insulina à jeun și HOMA-IR: utile, dar nu perfecte
Insulina à jeun poate arăta cât de mult efort secretor este necesar pentru menținerea glicemiei în repaus. HOMA-IR combină glicemia și insulina într-un indice estimativ al rezistenței la insulină, dar nu măsoară direct captarea musculară precum clampul hiperinsulinemic-euglicemic.
La sportivi foarte musculari, interpretarea trebuie făcută cu atenție. Masa musculară mare poate favoriza captarea glucozei, în timp ce grăsimea viscerală și somnul pot împinge în direcția opusă. Un indice este un rezumat statistic, nu o hartă completă a metabolismului.
57. IGF-1 trebuie interpretat după vârstă și context
IGF-1 variază puternic cu vârsta și este influențat de nutriție, ficat, insulină, GH și starea generală de sănătate. O valoare izolată nu spune dacă sursa este o secreție GH mai mare, o sensibilitate hepatică diferită sau o schimbare a proteinelor de legare.
În evaluarea medicală, IGF-1 este folosit în contextul suspiciunii de exces sau deficit al axei GH, nu ca scor de performanță. Nu există un IGF-1 universal care maximizează forța. Receptorii și țesuturile nu citesc clasamentul unui laborator.
58. WADA 2026: toate cele patru zone sunt relevante antidoping
Lista WADA 2026 interzice permanent steroizii anabolizanți androgeni în secțiunea S1. GH, analogii și factorii săi de eliberare sunt incluși în S2, iar IGF-1 și analogii săi sunt de asemenea interziși ca factori de creștere. Insulinele și mimeticii insulinici apar în S4.4, modulatori metabolici.
Pentru sportivul testat, faptul că o substanță are utilizare medicală nu înseamnă automat că este permisă. Regulile privind Excepția de Uz Terapeutic și statutul concret trebuie verificate prin organizația antidoping relevantă. Articolul explică fiziologia și nu oferă scheme de utilizare.
59. Cinci mituri despre „sinergia anabolică”
Primul mit este că mai mult din fiecare semnal produce automat mai mult mușchi. Al doilea este că insulina mare înseamnă anabolism mai bun. Al treilea este că GH și IGF-1 au aceleași efecte. Al patrulea este că masa musculară mare protejează complet de rezistență la insulină. Al cincilea este că o combinație anabolică nu poate avea costuri metabolice.
Fiecare dintre aceste idei transformă o rețea în slogan. Hormonii au efecte dependente de doză, timp, țesut, nutriție și starea inițială. Un beneficiu într-un compartiment poate produce costuri în altul. Cea mai utilă întrebare nu este „cât de anabolic este?”, ci „ce modifică în întregul organism?”
60. Concluzie: anabolismul este o rețea, nu un buton
Androgenii, insulina, GH și IGF-1 cooperează în creștere și metabolism, dar o fac prin mecanisme diferite. Androgenii schimbă programul celular, insulina semnalează disponibilitatea nutrienților, GH mobilizează combustibil și stimulează axa de creștere, iar IGF-1 conectează creșterea cu supraviețuirea și metabolismul celular.
În mușchi, efectele lor pot converge către o balanță proteică favorabilă. În ficat și țesut adipos, aceleași semnale pot intra în tensiune. GH poate contracara insulina, insulina poate permite producția IGF-1, androgenii pot îmbunătăți compoziția corporală dar pot crea alte costuri când sunt suprfiziologici. Fiziologia adevărată începe exact în aceste intersecții.
Pentru Strongman, mesajul final al seriei este simplu: performanța este produsul unei infrastructuri. Mușchiul are nevoie de nerv, os, tendon, ficat, pancreas, inimă și somn. Un sistem care ridică mai mult astăzi, dar își pierde sensibilitatea la insulină, tensiunea controlată sau sănătatea cardiovasculară, nu este un sistem optimizat, ci unul care plătește o factură amânată.
Surse principale
Bang P. Pediatric Implications of Normal Insulin-GH-IGF Axis Physiology. Endotext. Actualizat 2024. O sinteză detaliată a interacțiunii dintre insulină, GH și IGF-1 și a modului în care nutriția reglează axa.
Jørgensen JOL și colab. Normal Physiology of Growth Hormone in Normal Adults. Endotext. Actualizat recent. Secțiunile privind efectele metabolice ale GH, lipoliza, glucoza și relația cu starea nutrițională.
Vijayakumar A, Yakar S, Leroith D. The Intricate Role of Growth Hormone in Metabolism. Frontiers in Endocrinology. 2011;2:32. Review asupra efectelor GH în metabolismul glucidic și lipidic.
The Fascinating Interplay between Growth Hormone, Insulin-Like Growth Factor-1, and Insulin. Endocrinology and Metabolism. 2024. Review clinic și fiziologic asupra interacțiunii GH-IGF-1-insulină în diferite stări metabolice.
Kelly DM, Jones TH și colab. Mechanisms underlying the metabolic actions of testosterone in humans: A narrative review. 2020. Sinteză asupra testosteronului, compoziției corporale, sensibilității la insulină și semnalizării metabolice.
Endotext. Acromegaly. Secțiunile privind reglarea IGF-1, IGFBP-urile, receptorii hibrizi insulină/IGF-1 și efectele metabolice ale excesului de GH.
Laron Z, Werner H. Opposing Metabolic Effects of Growth Hormone and IGF-I: Review and Clinical Implications. Endocrine Reviews. 2025;46(6):877-890. Analiză modernă a diferențelor dintre efectele metabolice ale GH și IGF-1.
World Anti-Doping Agency. 2026 Prohibited List. Secțiunile S1 Anabolic Agents, S2 Peptide Hormones and Growth Factors și S4 Hormone and Metabolic Modulators.
Notă editorială: materialul are scop educațional și nu reprezintă recomandare medicală, diagnostic sau protocol de administrare pentru androgeni, insulină, GH, IGF-1 ori alte substanțe care modifică aceste axe. Manipularea farmacologică necorespunzătoare poate produce hipoglicemie, tulburări metabolice, cardiovasculare și endocrine severe.
Mai multe din jurnal
Antrenament
Știința antrenamentului în Strongman - Episodul X: Programarea pentru competiție
Cum construiești un bloc complet de pregătire pentru competiție în Strongman: calendar, probe, volum, intensitate, specificitate, simulări, autoreglare, taper și managementul oboselii.
Antrenament
Știința antrenamentului în Strongman - Episodul IX: Peaking-ul
Peaking-ul în Strongman: cum transformi forma construită în lunile de antrenament într-o performanță maximă în ziua competiției, prin reducerea oboselii, păstrarea adaptărilor și gestionarea specificității.